


Россия, Республика Башкортостан, Уфа


СДЕЛАЙТЕ СВОИ УРОКИ ЕЩЁ ЭФФЕКТИВНЕЕ, А ЖИЗНЬ СВОБОДНЕЕ
Благодаря готовым учебным материалам для работы в классе и дистанционно
Скидки до 50 % на комплекты
только до
Готовые ключевые этапы урока всегда будут у вас под рукой
Организационный момент
Проверка знаний
Объяснение материала
Закрепление изученного
Итоги урока

Была в сети 14.10.2026 11:59

Мустаева Лейсан Миннимухаматовна
учитель химии
 30 111
 1 018

Местоположение
Специализация
Литературный обзор: "Адаптации птиц к полету"
Категория:
Биология
30.06.2017 12:21

Просмотр содержимого документа
«Литературный обзор: "Адаптации птиц к полету"»
Адаптации птиц к полету.
Большинство представителей класса птиц освоили наземно-воздушную среду обитания. Приспособление птиц к полету обусловлено особенностями их внешнего и внутреннего строения.
Признаки приспособления птиц к полету:
Крыло. Скелет крыла.
Передние конечности птиц — крылья — являются главными частями тела, приспособленными для полёта. Каждое крыло имеет главную поверхность, которой оно разрезает воздух, состоящую из трёх костей: плечевой, локтевой и лучевой.
Кисть конечности, которая эволюционно состояла из пяти пальцев, редуцированна до трёх пальцев (пальцы ІІ, ІІІ и IV или І, ІІ, ІІІ, в зависимости от схемы нумерации), а её назначением является место крепления маховых перьев первого порядка, одной из двух главных групп маховых перьев, которые обуславливают форму крыла.
Второй набор маховых перьев находится позади кистевого сустава локтевой кости и имеет название маховых второго порядка. Остальные перья называются кроющими и делятся на три набора. Иногда крыло имеет рудиментарные когти, хотя у большинства видов они исчезают к моменту достижения птицей половозрелости (например, у птенцов гоацина). Но они сохраняются у таких птиц как птица-секретарь, паламедеи, страусы и у некоторых других видов птиц в качестве частой, но не характерной черты. Когти ископаемого археоптерикса напоминают по строению когти гоацинов.
У гигантских буревестников и альбатросов также существует механизм закрепления суставов крыльев в одном положении для уменьшения нагрузки на мышцы во время парящего полёта.
В полёте крылья приводятся в движение мощными летательными мышцами, на которые приходится от 15 до 20 % общей массы птицы. Крыло поднимает подключичная мышца, а опускает — большая грудная; обе мышцы прикреплены к грудине.
Перья крыльев
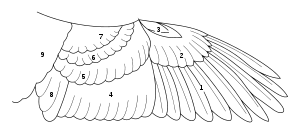
Группы перьев крыла: 1. Маховые 1-го порядка. 2. Кроющие 1-го порядка. 3. Перья крылышка (придаточного крыла). 4. Маховые 2-го порядка. 5. Большие кроющие 2-го порядка. 6. Средние кроющие 2-го порядка. 7. Малые кроющие 2-го порядка. 8. Маховые 3-го порядка. 9. Плечевые перья.
Главными перьями, используемыми для полёта и дающими крыльям и хвосту птиц их внешнюю форму, являются маховые перья. Маховое крыло обычно делится на две-три главных группы: маховые перья 1-го (первостепенные), 2-го (второстепенные) и иногда 3-го порядка.
Маховые перья 1-го порядка крепятся с помощью сухожилий к костям кисти, 2-го порядка — к локтевой кости, 3-го — к плечевой кости. Для большинства видов птиц маховые перья 1-го порядка в наибольшей мере отвечают за способность летать: даже полное удаление других перьев с крыльев не влияет на дальность и скорость полёта, но заметное укорочение маховых перьев 1-го порядка, особенно дистальных, практически лишает птиц способности летать. Большая часть площади маховых перьев покрыта так называемым кроющим оперением, которое защищает его и закрывает щели возле оснований. При потере птицей половины маховых перьев, машущий полёт возможен, однако подрезание кончиков маховых перьев делает его невозможным.
Форма крыльев
Форма крыла является важным фактором, определяющим тип и характеристики полёта, к которому способна птица. Разные формы крыльев отвечают разным компромиссным решениям для создания нужных характеристик, таких как скорость полёта, затраты энергии и манёвренность.
Форма крыла в двумерной горизонтальной проекции может быть приблизительно описана двумя параметрами: удлинением и нагрузкой на крыло. Удлинение крыла — это отношение размаха крыльев к средней ширине крыла (или квадрат размаха крыльев, разделённый на площадь крыльев). Нагрузка на крыло — отношение массы птицы к суммарной площади крыльев.
Воздух обтекает передний край крыла, а также выпуклую верхнюю поверхность. Это приводит к ускорению его движения и создаёт область пониженного давления, в то время как давление на нижнюю вогнутую поверхность крыла остаётся практически постоянным. Данная разница давления над крылом и под ним создаёт подъёмную силу.
Большинство видов птиц могут быть сгруппированы в несколько общих типов по форме крыльев. В частности, обычным делением является разделение на эллиптические крылья, крылья для скоростного полёта, крылья с относительно большим удлинением, и крылья для парящего полёта, описанные ниже.
Типичные формы крыльев
Эллиптические крылья
Эллиптические крылья короткие и округленные, с небольшим удлинением, которое позволяет птицам маневрировать в ограниченном пространстве, например в условиях густой растительности. Такие крылья характерны для лесных хищных птиц (например, ястреба) и многих воробьинообразных, особенно немигрирующих видов (мигрирующие виды птиц имеют длинные крылья для продолжительных перелётов). Также эта форма крыльев обычна у видов, которые избегают хищников за счёт быстрого взлёта, например, фазанов и куропаток.
Крылья для скоростного полёта
Крылья для скоростного полёта короткие и заострённые, имеют высокую нагрузку на крыло и обеспечивают высокую частоту взмахов для наибольшей возможной скорости за счёт значительных затрат энергии. Такой тип крыльев характерен для небольших птиц и характеризуются очень большой относительной длиной кисти крыла.
Этот тип крыльев характерен для птиц, способных развивать большую скорость полёта, таких как сапсан, стрижи и большинство утиных. Подобная форма крыльев характерна и для птиц группы чистиковые, хотя и для другой цели — чистиковые используют крылья для ныряния и «полёта» под водой. Птицы с такими крыльями являются рекордсменами по скорости — иглохвостый стриж (Hirundapus caudacutus) развивает скорость до 170 км/ч, а сапсан — до 300 км/ч. Сапсан является самым быстрым животным на земле.
Крылья с относительно большим удлинением
Крылья с относительно большим удлинением являются очень длинными и стройными, и обычно они характеризуются низкой нагрузкой на крыло и используются для медленного полёта, почти парения. Такие крылья характерны для буревестников, крачек, козодоеобразных и птиц, которые способны переходить на динамическое парение над волнами для сохранения энергии, что распространенно среди морских птиц.
Особым случаем этого типа являются крылья гигантских буревестников и альбатросов, наиболее приспособленных к продолжительному парению. Эти крылья характеризуются наименьшей относительной длиной кисти, около 25 % от длины крыла, и наибольшим числом маховых перьев второго порядка — 40.
Эти птицы также имеют типичный для них механизм закрепления суставов крыльев и отличия в строении маховых перьев кисти.
Крылья для парящего полёта
Крылья для парящего полёта относительно широкие и характерны для больших сухопутных птиц, таких как орлы, грифы, пеликаны и аисты. Глубокие бороздки на концах крыльев между маховыми перьями уменьшают силу сопротивления воздуха, а относительно короткий размер позволяет подниматься с поверхности земли без потребности в значительном разгоне.
Относительно подобны им крылья цапель и ибисов, которые используют их для медленного машущего полёта.
Хвост
В основе хвоста птиц лежат кости 5-7 позвонков и пигостиль, к которому крепятся рулевые перья хвоста. Число рулевых перьев хвоста различно у разных видов птиц, от их полного отсутствия у поганковых до 22-24 у пеликанов, уток и лебедей.
Рулевые перья хвоста способны раздвигаться, существенным образом увеличивая площадь. Также хвост может двигаться в двух направлениях с помощью шести пар мышц. Хотя у большинства птиц перья хвоста приблизительно одинаковой длины и образовывают плоский раскрытый хвост, форма хвоста может быть различной.
Например, у сороки, фазанов, олуш, некоторых голубей и кукушек центральные перья длиннее, что придаёт хвосту округлую форму. У некоторых фаэтонов, щурок, поморников, некоторых рябчиков и птиц-секретарей центральные перья намного длиннее.
Наоборот, у деревенской ласточки, фрегатов и некоторых крачек центральные перья намного короче, образовывая вилкообразный хвост.
Хвост принимает участие в стабилизации полёта и маневрировании за счёт как подъёмной силы, так и силы сопротивления.
Длинные жёсткие хвосты, особенно с длинными центральными перьями, наиболее приспособлены для создания аэродинамического сопротивления, способствуя стабильности полёта.
В то же время, вилкообразные хвосты создают подъёмную силу почти без силы сопротивления, обеспечивая манёвренность при быстром полёте.
Морские птицы часто имеют очень короткие хвосты, так как при медленном полёте им не требуется манёвренность.
У лесных птиц хвосты должны создавать высокую стабильность и иметь стойкость к столкновениям, для чего наиболее удобными являются длинные прямые хвосты.
Прочие адаптации к полету.
Хотя крылья и перья являются основными адаптациями к полёту, потребности полёта вызвали многие другие изменения в организме птиц.
Перья летающих птиц отличаются от перьев многих нелетающих птиц и оперённых динозавров наличием микроскопических крючков, которые сохраняют перо целостным и предоставляют ему необходимую для полёта прочность.
Из всех позвоночных наиболее развит мозжечок у птиц, что служит важной адаптацией к координации сложных движений и ориентации в трёхмерной среде. С полётом связано усиление роли зрения по сравнению с другими органами чувств.
Скелет птиц имеет ряд пустотелых костей, что заметно уменьшает его массу. Кроме того, у птиц отсутствует целый ряд костей, которые ещё существовали у археоптерикса, в частности, исчез длинный хвост. Челюсти с зубами были заменены лёгким клювом, в целом кости черепа стали более тонкими и легкими. Также в скелете появился киль, большая кость, к которой крепятся мышцы крыльев. Адаптациями к полёту считаются также срастание большей части позвонков, наличие пигостиля, к которому крепятся рулевые перья хвоста, и др.
С полётом связана перестройка мышечной системы, в частности, увеличение размеров больших грудных мышц — опускателей крыла. Их масса составляет от 10 до 25 % массы тела птицы.
Важной адаптацией, предназначенной для обеспечения высоких затрат энергии и, соответственно, высокой скорости метаболизма, является появление однонаправленного тока воздуха в лёгких — двойного дыхания. Воздух, попадая в воздушные мешки, проходит через лёгкие птиц при каждом вдохе и выдохе в одном и том же направлении, что позволяет (благодаря использованию принципа противотока), эффективно извлекать из него кислород (в выдыхаемом птицами воздухе около 12 % кислорода, в то время как у млекопитающих около 16 %). Воздушные мешки обеспечивают эффективное охлаждение тела при интенсивной работе мышц во время полёта. Работу дыхательной системы птиц определяет в том числе и положение бедренной кости. Бедренные кости птиц малоподвижны, поэтому при перемещении по земле они практически не смещаются из горизонтального положения. Именно такая фиксированная позиция кости позволяет поддерживать брюшной воздухоносный мешок на вдохе. Наличие четырёхкамерного сердца и двойного дыхания обеспечивают теплокровность птиц и очень высокую интенсивность их метаболизма. Частота дыхательных движений у мелких птиц в покое составляет около 100 в минуту и в полёте, видимо, может возрастать. Частота пульса в покое — до 400—600, а в полёте — до 1000 ударов в минуту.
Литература:
1.Биологический энциклопедический словарь под редакцией М. С. Гилярова и др., М., изд. Советская Энциклопедия, 1989.
2.Баянов М.Г. 2003. Серая цапля в Башкортостане. – Итоги биологических исследований (Вып. 7): Сборник научных трудов. Уфа: 27-29.
3.Баянов М.Г., Валуев В.А. Большой баклан в Башкирии // Биоразнообразие и биоресурсы Урала и сопредельных территорий: Материалы II международной конференции. Оренбург: Изд-во ОГПУ, 2002. С. 150.
4.Валуев В.А. 2002. К авифауне лесостепи Предуралья Башкирии. – Материалы к распространению птиц на Урале, в Приуралье и Западной Сибири. Екатеринбург: 69-71.
5.Валуев В.А. 2004. Экстраполяционный коэффициент как дополнение к учёту численности птиц по методике Ю.С. Равкина (1967) для территорий со значительной ландшафтной дифференциацией. – Вестник охотоведения, 1 (№3). М.: 291-293.
6.Валуев В.А. 2004. Обзор летней орнитофауны Предуралья и Южного Урала (отряды: гагарообразные, поганкообразные, веслоногие, аистообразные, фламингообразные, гусеобразные). – Вестник Башкирского университета. № 1. Уфа: 35-41.
7.Валуев В.А., Валуев К.В. 2001. Новые наблюдения редких птиц в Башкирии. – Итоги биологических исследований. Вып. 6. Сборник научных трудов. Уфа: 161-163.
8.Галиева Л.Ф. 2002. Интересные встречи птиц в Нагаево и на озере Кандры-куль в Башкирии. – Материалы к распространению птиц на Урале, в Приуралье и Западной Сибири. Екатеринбург: 86-87.
9.Жизнь животных. Энциклопедия в шести томах. Том 5. (Земноводные. Пресмыкающиеся). Общая редакция члена-корреспондента АН СССР профессора Л. А. Зенкевича. — Москва: Просвещение, 1969. — 488 стр.
10.Жизнь животных: в 6-ти томах. — М.: Просвещение. Под редакцией профессоров Н.А.Гладкова, А.В.Михеева. 1970.
11.Животный мир Башкортостана/ под редакцией М. Г. Баянова и профессора Е. В. Кучерова/ Уфа, "КИТАП" 1995.
12.Книзе А. А. Применение маршрутного метода количественного учета боровой птицы в условиях Ленинградской области и АКССР. Сб. «Пром. фауна и охот, хоз.», Л. — М., 1934, стр. 27— 34.
13.Лилиенталь О. Полёт птиц как основа искусства летать. — М., 2002 (рус.)
14.Наумов Н. П., Карташев Н. Н. Часть 2. Пресмыкающиеся, птицы, млекопитающие // Зоология позвоночных. — М.: Высшая школа, 1979. — С. 272.
15.Новиков Г. А. Упрощенный метод количественного учета птиц. Природа, № 2, 1947, стр. 57.
16.НовиковГ.А."Полевые исследования экологии наземных позвоночных животных"
( изд. "Советская наука" 1949 г.)17.Семенов-Тян- Шанский О. И. Опыт учета боровой дичи в Лапландском заповеднике. Там же, стр. 55—59.
18.Стахровский В. Г. и Морин Н. А. Учет тетерева и рябчика. Сб. «Верхне-Вычегодск. эксп.», М., 1932, стр. 196—202.
19.Щербаков А. Ф. Тетерев-глухарь, его распространение и запас. Сб. «Верхне-Вычегодск. эксп.», М., 1932, стр. 148—162.
20.Якоби В. Э. Морфоэкологические приспособления к скоростному полёту у птиц. — Механизмы полёта и ориентации птиц. — М.: Наука, 1966.
Вебинар для учителей

🎓 Свидетельство об участии ✨БЕСПЛАТНО!✨



